Communications Biology· Gianmarco Ferri·· 7 天前AI 评分50
跨时间尺度解读 NADH 荧光寿命(观点文章)
Interpreting NADH fluorescence lifetime across timescales
AI 导读
《Communications Biology》观点文章审视 NADH 荧光寿命成像的解释框架,指出仅“NADH 结合酶群体稳定”这一假设有真正的时间保证。解释风险随实验时间尺度增大:急性扰动大多受保护,长期处理与分化不然;基于 phasor 的模拟显示,酶景观变化时 bound-NADH 坐标漂移可被量化。
- 背景
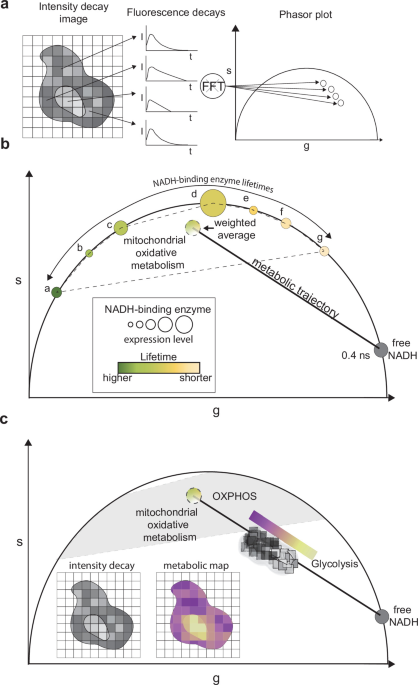
- NADH 荧光寿命成像(FLIM)能在不引入标记的情况下监测活细胞生物能量学,其解读依赖一个由来已久的两态框架:游离 NADH 寿命约 0.4 ns,与酶结合的 NADH 约 2–4 ns。据此,信号向游离组分偏移被解读为糖酵解活性升高,向结合组分迁移则被视为氧化磷酸化(OXPHOS)的标志;这一对应关系来自使用机制明确的药理工具所做的实证工作。数据分析方面,早期依靠衰减曲线的双指数拟合;自 Stringari 等人的工作以后,免拟合的 phasor 方法逐渐成为主流——它把逐像素的荧光强度衰减映射成 phasor 图上的唯一坐标。这套几何框架之所以流行,在于一次无标记成像即可得到定量、空间分辨的代谢图。作者要追问的是:它究竟在什么条件下成立。
- 做法
- 这是一篇 Perspective,没有新的实验数据;其做法是把整套解读拆成生化、空间、时间三根支柱逐一检验,并用 phasor 模拟考察酶谱改变的情形。生化层面,作者指出,经典映射把糖酵解当作胞质游离 NADH 的主要驱动,把线粒体 Complex I 当作结合组分的归宿,但 FLIM 测的是稳态浓度与饱和水平,而非反应速率(通量);这一归属建立在罗滕酮等呼吸链抑制剂与 2-脱氧葡萄糖等糖酵解阻断剂的扰动实验之上。作者随后列出被这一二分法掩盖的组分:乳酸脱氢酶等胞质氧化还原酶贡献的胞质结合态、线粒体基质内部酶密度与复合体组装的异质性、各结合态量子产率差异、与 NADH 光谱不可区分却代谢不同的 NADPH、总 NAD(H) 池大小的变化,以及复杂组织中胶原、弹性蛋白与黄素带来的背景。空间层面,作者检验「读出几乎全部来自线粒体网络」这一前提。时间层面,作者把它拆成两条并不自动同时成立的要求:酶的身份与丰度不变,以及结合构型不变。最后给出跨不同实验情形的设计与报告建议。
- 结论
- 作者的核心判断是:三根支柱中只有时间支柱具备真正基于时间的保证,因此解读风险主要随实验时程变化。急性扰动大体受到保护,长时间处理与分化则不受保护;即便是急性情形,也仍有残余的非蛋白组学风险值得控制。支持这一分界的量化线索是:哺乳动物细胞中酶丰度的适应性变化通常在大约 6–24 h 内变得可观,具体取决于刺激类型以及是否动用 HIF-1α、c-MYC、PGC-1α 这类代谢基因转录调控因子;因此,远低于该阈值的扰动可以在稳定景观假设下放心解读。典型急性实验中,处理前后细胞内酶谱可视为不变,phasor 云团的位移因此沿既有代谢轨迹进行(如向 OXPHOS 方向),寿命的变化量可靠报告糖酵解活性与氧化活性之间的平衡移动;胰腺 β 细胞等研究即利用短时程让细胞充当自身对照,从而抵消蛋白组成、NADPH 贡献等对急性扰动不敏感的变异。Niederschweiberer 等人把这一逻辑形式化为「代谢 delta」,即呼吸抑制后 NADH 寿命的变化。但同一急性情形仍可能被脱靶生化信号位移结合态参考点,而不涉及任何酶丰度的变化:图 2b 列出占据调制(竞争性代谢物把酶在结合状态之间重新分配)与活性或构象调制两类。模拟还显示,即使酶景观确实改变,结合态坐标的漂移也可被量化,而不必当作噪声丢弃。
- 机制
- 异质性的根源在于:结合态寿命并不是 universal semicircle 上某个固定的通用坐标,而是多种氧化还原酶各自施加不同构象约束后形成的寿命分布的加权平均;这个加权平均随细胞表达哪些酶、以及局部代谢环境而变。由于单个细胞具体的酶丰度与实时参与程度无法先验获知,把结合端点当作单一静态参考只是操作上的简化。它之所以仍落在有生物学含义的区域,部分是因为与 Complex I 结合会显著增强 NADH 荧光,把集合坐标锚定住。在时间维度上,转录与翻译的生物学惯性只保护「有哪些酶、各有多少」这一条,不保护结合构型:配体结合与解离发生在秒到分钟尺度,竞争代谢物局部浓度的变化可以在蛋白组完全没变的情况下位移结合态参考点。
- 意义
- 作者并未否认 NADH FLIM 读出的有效性,而是把「何时可以把它读成糖酵解与 OXPHOS 的平衡」变成一个有条件的判据:先确定实验落在急性还是慢性情形,再决定解读能走多远。对做活细胞代谢成像的人来说,这直接影响扰动时程的设计、对照的选择与结果的报告方式;也解释了为何更换拟合方法(免拟合的几何表示或数值衰减拟合)无法解决问题——难点在生物学而非算法。对在复杂组织或长期分化模型中使该读出的人,这提示通路层面的归因需要额外证据。
- 局限
- 作者承认的边界包括:线粒体主导性通常在整细胞或成像视野尺度上被援引和验证,往往把一帧内的许多细胞合并在一起;而它在单个细胞内部是否同等成立、是否随亚细胞区室系统性变化,尚未被系统考察。跨单个线粒体、基质与膜间隙之间、以及与胞质贡献相关的更细分辨率直接验证仍然有限。6–24 h 更适合当作风险的近似指标而非硬性截断;量子产率与寿命近似成正比也只是为说明而采用的惯例,并非对每一种 NADH 结合酶都成立的实验定则。
- 下一步
- 作者呼吁开展按区室分辨的研究,把光学读出与独立生化测量做关联,以检验更细尺度上的权重;并把基于 phasor 的模拟用作量化工具,在酶景观改变时对结合态坐标的漂移给出估计,而不是把它视作噪声。文章的收尾落在实用层面:针对上述不同情形,为 NADH FLIM 实验的设计与报告提供指导。
本页是 AI 精读,不转载论文原文;完整论文(含方法、图表与参考文献)见原文
来源:Communications Biology · nature.com